【Science】靶向Peptide-MHCI复合物的高特异性Binder设计
随着生成式 AI 蛋白设计技术的成熟,一套 “计算设计驱动 - 高通量筛选验证 - 多维度功能表征” 的全流程技术体系已经成型。今天给大家分享一篇由华盛顿大学David Baker团队发表在Science上的一篇文章“Design of high-specificity binders for peptide–MHC-I complexes”。文章聚焦肽-MHC-I复合物高特异性结合剂的设计,借助深度学习蛋白质设计工具,从头设计出小型蛋白质结合物,为pMHC靶向的蛋白质及细胞疗法提供了新方法。
一、实验方法:计算设计与实验验证的全链条技术体系
研究建立了“AI 生成 - 多轮计算筛选 - 高通量实验筛选 - 多维度功能表征”的完整技术管线,覆盖从靶点结构输入到功能分子验证的全流程,可在数周内完成针对全新靶点的结合蛋白开发。
1.1 计算设计与多层级筛选管线
计算设计是整个体系的核心,其核心目标是生成“以抗原肽为主要结合界面、尽可能减少与 MHC 骨架接触”的结合蛋白,从分子设计源头保障肽特异性。
(1)靶点结构准备
研究覆盖两类靶点输入结构,验证管线的普适性:
-
实验解析结构:从 PDB 数据库获取已解析的 pMHC 复合物结构,包括 A01:01-MAGE-A3、A03:01-CTNNb1、A*02:01-HIV Env 等 8 个靶点;
-
预测结构:针对无实验结构的靶点,采用经 MHC 优化的 AlphaFold2 模型或 AlphaFold3 预测复合物结构,如 A02:01-PAP、A02:01-PRAME。
-
设计前,首先提取抗原肽中朝向溶剂侧的氨基酸残基作为“热点残基”,作为扩散模型的空间约束条件,引导生成的结合蛋白精准靶向肽段区域。
(2)RFdiffusion 骨架生成
采用 RFdiffusion 生成式扩散模型进行结合蛋白骨架设计,分为两种模式:
-
从头设计模式:从随机噪声出发,通过 50 步去噪过程,生成全新的蛋白质骨架,使其贴合在 MHC 抗原结合槽上方,与抗原肽形成广泛相互作用。每个靶点生成数千至数万条独立骨架,用于后续筛选。
-
部分扩散(脚手架复用)模式:针对已验证的成熟骨架,仅在 12-25 步的去噪区间内对界面区域进行局部重构,快速适配新的抗原肽与 MHC 亚型。该模式可大幅降低计算量,提升同家族靶点的开发效率。
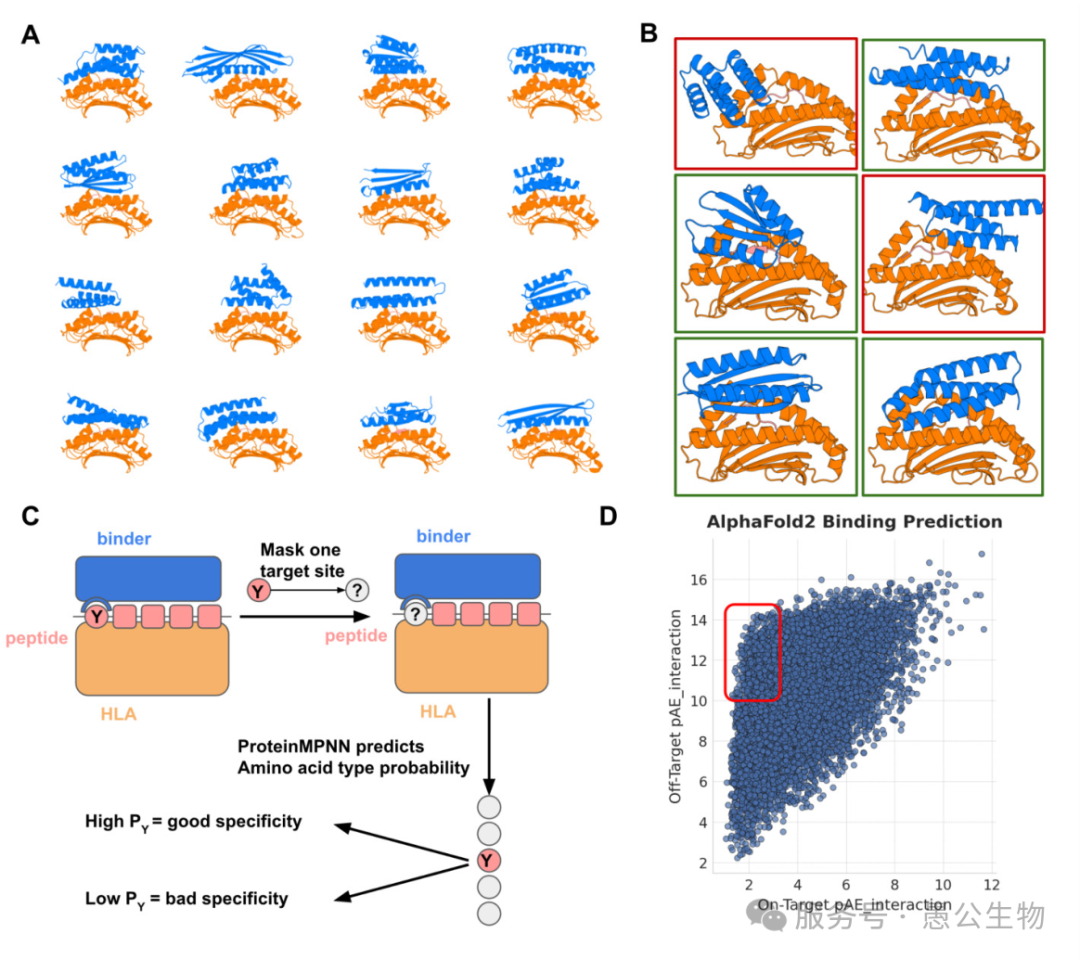
图1 特异性 pMHC结合蛋白的计算设计
(3)ProteinMPNN 序列设计
对生成的所有骨架,使用 ProteinMPNN 模型进行氨基酸序列设计,基于三维骨架输出最优的折叠与结合序列,每个骨架生成 4-32 条不同序列,兼顾折叠稳定性与结合亲和力。
(4)四层递进式计算筛选
所有设计序列需经过四轮计算筛选,淘汰低质量候选,仅保留最优分子进入实验验证:
-
基础折叠与结合质量筛选:通过 AlphaFold2 分别预测结合蛋白单体结构、结合蛋白 - pMHC 复合物结构,以 pAE 相互作用评分、单体 pLDDT、设计模型与预测结构的 RMSD 为核心指标,筛选折叠稳定、结合模式可靠的设计。
-
Rosetta CMS 界面特征筛选:采用 Rosetta 接触分子表面(CMS)算法,专门计算结合蛋白与抗原肽的接触面积,而非与整个 pMHC 的接触面积,优先选择肽接触占比高、MHC 接触少的设计,从结构层面保障肽特异性。
-
ProteinMPNN 特异性初筛:对抗原肽进行系统性丙氨酸扫描突变,通过 ProteinMPNN 计算突变前后结合的概率变化。对肽突变敏感的分子,说明结合高度依赖肽段序列,特异性潜力更强;反之则特异性差,予以淘汰。
-
AF-MHC 脱靶风险预测:使用经 MHC 微调的 AlphaFold2 模型,分别预测结合蛋白与靶肽、2-3 条同源脱靶肽的复合物结构,计算两者的 pAE 差值 ΔpAE,定量评估选择性。对脱靶肽结合置信度高的分子直接淘汰,提前规避安全性风险。
完成筛选后,优质骨架可进入下一轮部分扩散优化,通过多轮迭代持续提升分子的亲和力与特异性。
1.2 酵母表面展示高通量筛选
计算筛选后的候选分子,通过酵母表面展示系统进行实验水平的结合活性与特异性验证,是连接计算设计与功能分子的关键环节。
(1)DNA 文库构建
将所有设计序列两端通过 GS 接头统一长度,优化酿酒酵母密码子后,合成寡核苷酸文库,克隆至酵母展示载体,使结合蛋白展示在酵母细胞表面,同时通过 c-Myc 标签标定表达量。
(2)双荧光流式分选策略
采用双色荧光标记的 pMHC 四聚体与酵母细胞共孵育:PE 标记靶标 pMHC 四聚体,APC 标记脱靶 pMHC 四聚体。通过流式细胞仪分选“靶标结合阳性、脱靶结合阴性”的细胞群,即右下象限的阳性克隆。
筛选采用递进式策略:首轮使用高浓度抗原富集所有结合克隆;后续逐轮降低抗原浓度、增加脱靶竞争压力,逐步富集高亲和力、高特异性的阳性克隆。
(3)NGS 富集分析与克隆鉴定
对每一轮分选前后的酵母文库进行二代测序,通过序列富集倍数判断分子的结合能力,富集倍数越高,亲和力与特异性通常越好。最终挑选 Top 序列进行单克隆验证,获得精准的阳性结合分子。
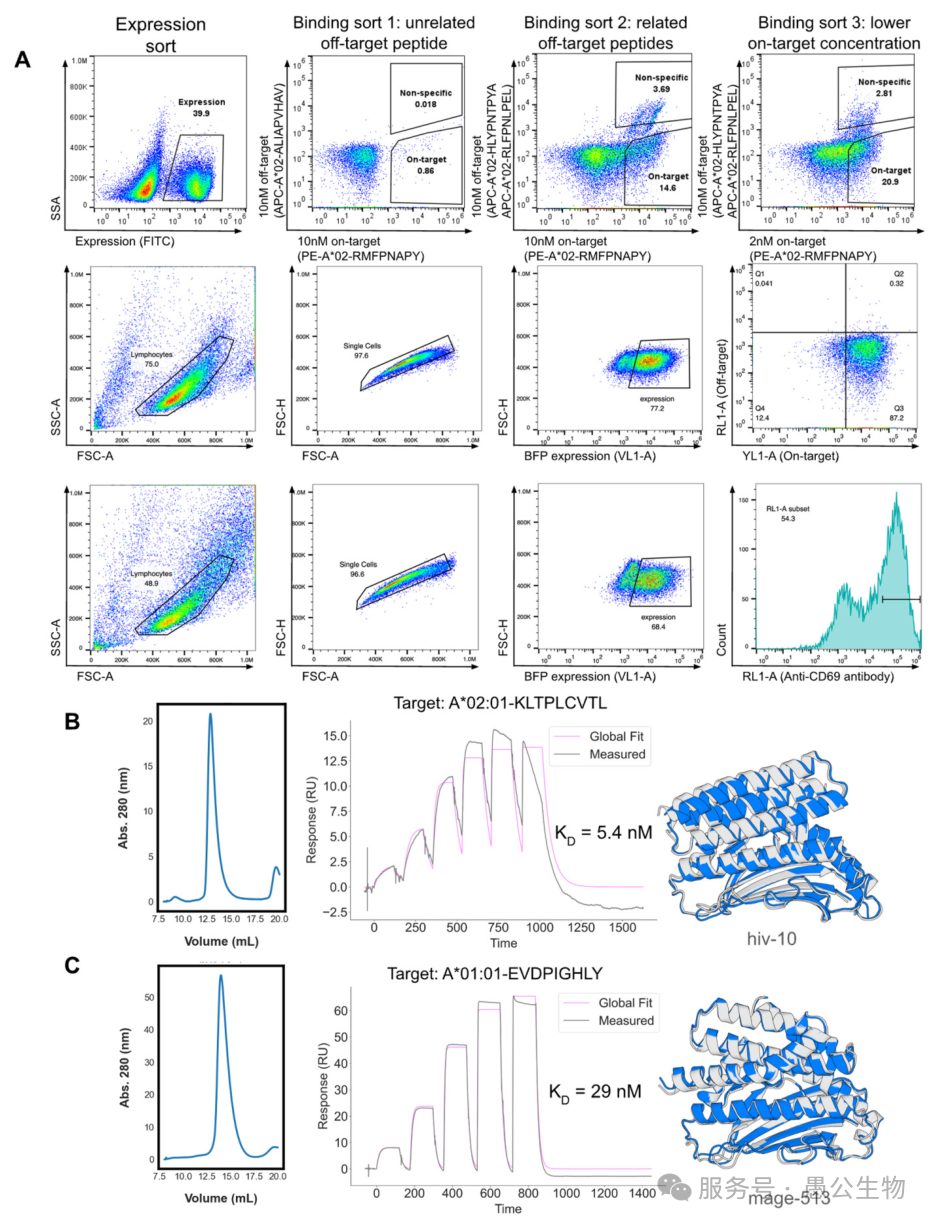
图2 酵母表面展示文库筛选、Jurkat T 细胞鉴定以及各阳性候选分子的生化特性分析
1.3 生化与结构定量表征
对筛选获得的阳性克隆,进行蛋白水平的纯化与定量表征,明确其成药性参数与分子作用机制。
(1)蛋白表达与纯化
将结合蛋白基因克隆至 pET29b (+) 载体,C 端融合 His 标签。转化大肠杆菌后诱导表达,超声裂解后通过镍柱亲和纯化,再经凝胶排阻层析(SEC)进一步纯化,收集单体峰组分用于后续实验。
(2)结合动力学测定
采用表面等离子体共振(SPR)技术测定结合亲和力:通过生物素捕获试剂盒将 pMHC 单体固定在芯片上,注入不同浓度的结合蛋白,监测结合与解离信号。通过全局拟合 1:1 Langmuir 结合模型,计算结合速率、解离速率与平衡解离常数(KD)。
(3)复合物晶体结构解析
针对代表性分子,将 pMHC 复合物与结合蛋白按比例混合共孵育,纯化后浓缩进行结晶筛选。优化后获得高质量晶体,在同步辐射光源收集衍射数据,解析原子分辨率的复合物三维结构,验证设计的准确性。
1.4 细胞功能与特异性验证
为评估结合蛋白在免疫治疗场景的功能潜力,研究将其整合至 CAR 结构中,从细胞系到原代细胞进行多维度功能验证。
(1)CAR 构建与 Jurkat 细胞系建立
CAR 骨架从 N 端到 C 端依次为:CD28 信号肽 - FLAG 标签 - 结合蛋白 - CD8 铰链区 - CD28 跨膜区 - 4-1BB 胞内结构域 - CD3ζ 胞内结构域 - P2A - 荧光蛋白 - P2A - 嘌呤霉素抗性。通过慢病毒转染 Jurkat 细胞,筛选获得稳定表达 CAR 的细胞系。
(2)CD69 激活实验
将表达 CAR 的 Jurkat 细胞与脉冲了不同肽段的抗原呈递细胞共孵育 12-18 小时,染色后通过流式细胞术检测 CD69 的表达水平,以平均荧光强度定量评估 T 细胞的激活程度与特异性。
(3)双向丙氨酸扫描验证
分别对抗原肽、结合蛋白界面残基进行丙氨酸突变,通过激活实验检测突变对结合与激活的影响,明确关键作用残基,验证分子识别机制。
(4)全局肽库脱靶筛选
构建酵母展示的随机肽段 - HLA 文库,通过生物素化的结合蛋白进行多轮筛选富集,测序鉴定所有潜在结合的肽段。结合人类蛋白质组序列比对,筛选潜在自体脱靶抗原,系统性评估分子的脱靶风险。
(5)原代 T 细胞杀伤实验
从人外周血单个核细胞中分离 CD3+ T 细胞,激活后通过慢病毒转导构建 CAR-T 细胞。将 CAR-T 细胞与荧光素酶标记的靶细胞按不同效靶比共孵育,24h、48h 后检测发光强度计算靶细胞裂解率,定量评估特异性杀伤能力。
二、实验结果:多维度验证设计的高活性与高特异性
依托上述技术管线,研究在 11 个结构多样的 pMHC 靶点上完成了全面验证,覆盖 4 种 HLA 等位基因,靶点类型包含病毒抗原、肿瘤相关抗原与新抗原,充分证明了技术的普适性与可靠性。
2.1 广谱靶点覆盖:11 个靶点全部获得特异性结合子
研究针对 11 个靶点分别设计并合成了酵母展示文库,通过多轮 FACS 分选后,所有靶点均成功筛选到特异性结合克隆。流式检测显示,阳性克隆均可特异性结合靶标 pMHC 四聚体,几乎不结合同源脱靶肽 pMHC 四聚体,在散点图中清晰聚集于右下象限。
其中 8 个靶点通过从头扩散设计获得,另外 3 个通过部分扩散脚手架复用获得,证明两种设计模式均具备稳定的成功率。
2.2 生化性质优异:纳摩尔级亲和力,单体状态稳定
研究对代表性分子 hiv-10(靶向 HIV Env/A02:01)与 mage-513(靶向 MAGE-A3/A01:01)进行了原核表达与纯化。
-
凝胶排阻层析结果显示,两个分子均呈现单一、对称的单体洗脱峰,无多聚体峰,说明 AI 设计的蛋白折叠正确、性质稳定,无聚集倾向,具备良好的成药性基础。
-
SPR 检测显示,两个分子均达到纳摩尔级结合亲和力,远高于天然 TCR 的微摩尔级亲和力,足以支撑 CAR-T 的有效激活。其中 PRAME 靶点的 prame-2 与 prame-9 解离常数分别为 35 nM 与 96 nM,性能优异。
2.3 原子级精度验证:晶体结构与设计模型高度吻合
为从原子水平验证设计的准确性,研究解析了 mart1-3 结合蛋白与 A*02:01-MART-1 肽复合物的 2.2 Å 分辨率晶体结构。
结构比对结果显示:设计模型与晶体结构的 Cα 骨架 RMSD 仅为 0.4 Å,界面侧链的构象、氢键网络、疏水相互作用均与设计预期完全一致。mart1-3 结合蛋白精准地“扣”在 MART-1 肽的上方,通过疏水作用识别肽段第 5 位亮氨酸侧链,同时通过氢键锚定肽段第 6 位甘氨酸、第 7 位异亮氨酸与第 9 位苏氨酸的主链与侧链,所有相互作用均与设计完全吻合。
这一结果直接证明,RFdiffusion+ProteinMPNN 的设计体系具备原子级的分子设计精度,可精准编程蛋白 - 蛋白间的相互作用模式。
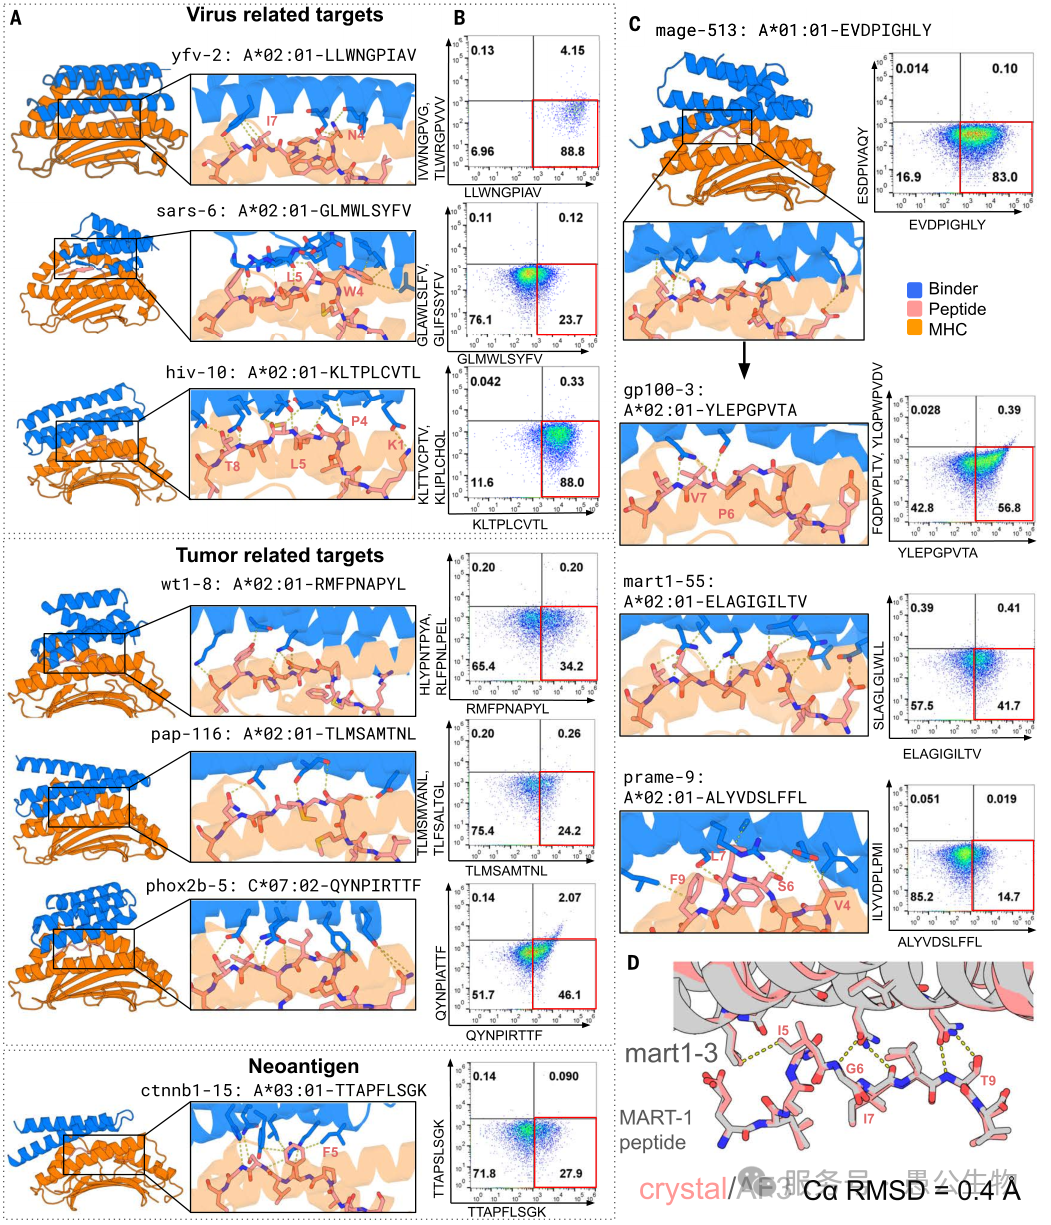
图3 Binder模型设计与实验验证
2.4 脚手架复用:单一骨架适配多类靶点
研究验证了部分扩散脚手架复用策略的有效性:以一个针对 A03:01 靶点的设计骨架为起点,通过部分扩散快速适配了 MAGE-A3/A01:01、gp100/A02:01、MART-1/A02:01、PRAME/A*02:01 等多个不同 HLA 亚型、不同肽序列的靶点,均成功获得了特异性结合子。
该结果证明,pMHC 结合蛋白的核心骨架具备很强的可迁移性,通过局部界面重构即可适配不同靶点,大幅缩短后续靶点的开发周期与计算成本,为规模化开发 pMHC 靶向分子库提供了可行路径。
2.5 细胞水平功能:CAR 介导严格的肽特异性 T 细胞激活
研究将 8 个靶点的结合蛋白分别构建为 CAR,在 Jurkat 细胞中验证激活功能,核心结果如下:
-
靶肽特异性激活:所有 CAR 均仅在 APC 细胞脉冲靶肽时显著上调 CD69,激活信号强烈;脉冲同源脱靶肽时,CD69 水平与空白对照组无显著差异,证明结合蛋白的肽特异性在 CAR 水平得到了完整保留。
-
低自体背景激活:表达 HLA 的 293T 细胞表面存在大量自体肽段,但多数 CAR 仅在脉冲靶肽时激活,无明显的自体肽背景激活。其中 mage-513 的特异性最为优异,仅 MAGE-A3 肽可诱导强激活,Titin 同源脱靶肽与自体肽均无明显激活信号。
-
无实验结构靶点同样有效:针对无晶体结构的 PRAME、PHOX2B 靶点,基于 AlphaFold 预测结构设计的结合蛋白,同样成功介导了特异性的 T 细胞激活,亲和力与功能均达到实验结构靶点水平,证明预测结构完全可以作为设计起点,极大拓展了可靶向的靶点范围。
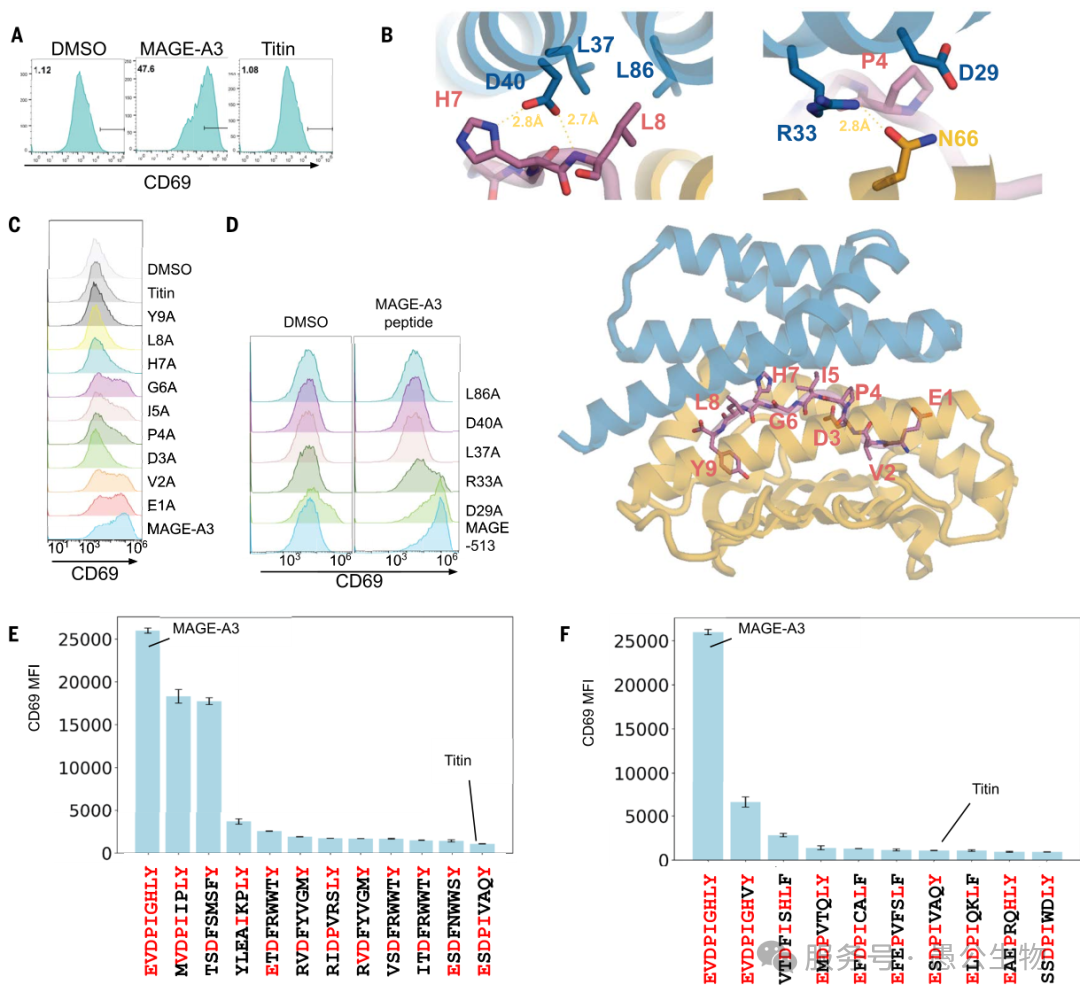
图4 不同条件下CAR-T细胞的激活强度
三、技术价值与应用前景
这套 AI 驱动的 pMHC 结合蛋白开发体系,突破了传统筛选方法的诸多瓶颈,其技术价值与应用场景远超单一靶点开发,将在多个领域产生深远影响。
-
第一,实体瘤免疫治疗的核心工具升级。pMHC 靶向是突破实体瘤表面靶点匮乏困境的核心方向,AI 设计的结合蛋白相比天然 TCR,具备亲和力高、体积小、稳定性好、特异性可控等多重优势,可直接用于 CAR-T、TCR-T、双特异性 T 细胞衔接器等多种免疫治疗形式,大幅提升实体瘤免疫治疗的开发效率与安全性。
-
第二,技术外延拓展至更多应用场景。这套“定向约束扩散 + 多层级筛选 + 实验验证”的设计逻辑具有极强的通用性,未来可拓展至其他多肽 - 蛋白复合物、小分子抗原靶点的结合蛋白设计,为更多难成药靶点提供解决方案。
总体而言,这项研究不仅是 AI 蛋白设计在免疫治疗领域的里程碑式突破,更标志着蛋白药物开发正式进入了“理性设计、按需定制”的新时代。随着算法的持续迭代与实验体系的不断标准化,AI 设计的蛋白药物将逐步从实验室走向临床,为更多难治性疾病带来治愈的希望。